STL : biochimie, biologie et biotechnologies, juin 2025
Aller à un exercice ou une partie
Proposition de corrigé — non officielle. Baccalauréat 2025. Baccalauréat technologique - STL — Métropole — 18 juin 2025.
Ouvrir le sujet officiel · Télécharger une copie du sujet · Annales : Sujets du bac STL
Partie I — Produire une mercure-réductase
Questions 1 à 4 — Choisir le modèle bactérien
Q1. Dans les essais du document 1, Cupriavidus metallidurans cultive à 30 °C, en anaérobiose, avec nitrates comme source d’énergie et CO₂ comme source de carbone : le type trophique mis en évidence est chimioautotrophe. E. coli cultive à 37 °C, avec glucose comme source d’énergie et de carbone, en aérobiose ou en anaérobiose : elle est chimiohétérotrophe. Ces conclusions décrivent les conditions testées ; un milieu limpide ne prouve pas l’absence de toute capacité de croissance dans d’autres conditions.
Q2. La partie approximativement rectiligne du graphe ln D = f(t) s’étend de 75 à 135 min. C’est la phase exponentielle : le logarithme de la biomasse augmente à vitesse à peu près constante.
Q3. On choisit deux points de cette partie, par exemple (90 min ; 0) et (120 min ; 0,90) :
μ = (0,90 − 0)/(120 − 90) = 0,030 min⁻¹.
G = ln 2/μ = 0,693/0,030 ≈ 23 min, soit 0,385 h. Le temps annoncé pour C. metallidurans, 128 ± 12 h, est beaucoup plus long : la valeur centrale est environ 330 fois supérieure. Les lectures graphiques ne justifient pas une précision à la seconde.
Q4. E. coli répond au critère chimiohétérotrophe et possède un temps de génération court. Cela favorise une production rapide de biomasse. Elle ne produit toutefois pas spontanément l’enzyme recherchée : il faut y introduire le gène merA et vérifier l’expression ainsi que l’activité de la protéine. Le rendement élevé reste un critère à mesurer, pas une conséquence automatique du choix de la bactérie.
Questions 5 et 6 — Construire le plasmide
Q5. EcoRI coupe le vecteur au site de clonage et les extrémités ajoutées au gène merA. Les extrémités cohésives compatibles permettent leur ligation. Le gène ne possède pas de site EcoRI interne : cette enzyme ne le découpe donc pas en fragments dans le modèle fourni, contrairement aux autres enzymes citées.
Q6. Les extrémités obtenues étant compatibles, plusieurs ligations sont possibles : un vecteur refermé sans insert, un vecteur avec merA dans un sens, ou avec merA dans le sens opposé. Le schéma représente ces trois possibilités ; des assemblages comportant plusieurs inserts peuvent aussi se former.
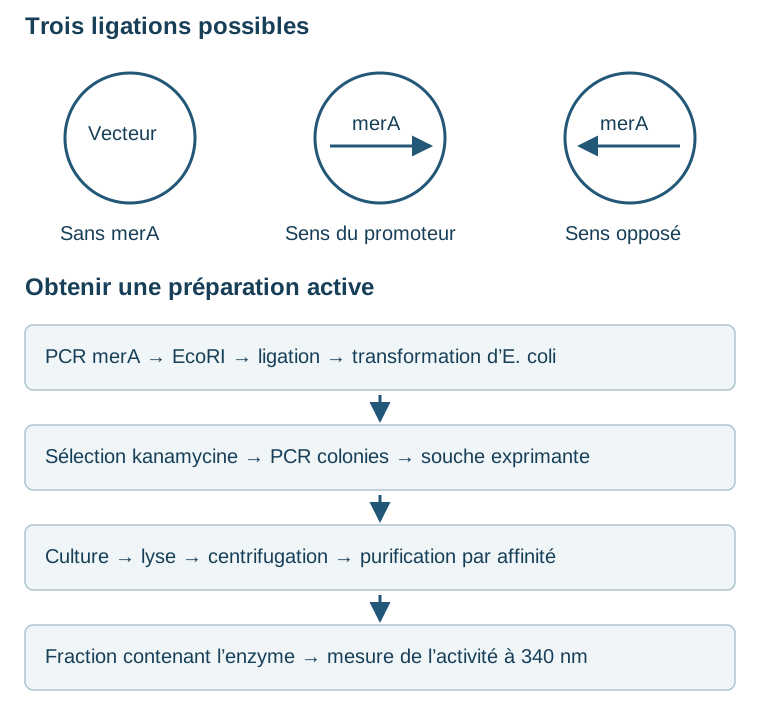
La résistance à l’antibiotique sélectionne le vecteur, mais ne distingue pas ces constructions. La présence de merA ne garantit pas non plus son orientation favorable à l’expression.
Questions 7 à 9 — Sélectionner et vérifier les colonies
Q7. Le vecteur porte KanR. Sur milieu supplémenté en kanamycine, les bactéries non transformées, naturellement sensibles, ne cultivent pas ; celles ayant acquis un plasmide portant KanR peuvent former des colonies.
Q8. Les colonies 1 et 3 produisent une bande proche de 741 pb, taille attendue pour la PCR ciblant merA. Elles sont compatibles avec la présence du plasmide recombinant. Les colonies 2 et 4 ne montrent pas cette bande. Le contrôle 5, sans suspension bactérienne, est négatif : aucune contamination détectable du mélange n’est révélée par ce contrôle. Cette PCR vérifie la présence de la séquence ciblée ; elle ne distingue pas les deux orientations de l’insert.
Q9. Un plasmide refermé sans merA possède toujours KanR. Une bactérie portant ce vecteur peut donc cultiver sur kanamycine sans produire l’amplicon caractéristique. Sélection antibiotique et vérification de l’insert répondent à deux questions différentes.
Question 10 — Purifier l’enzyme
Étape 1, fixation. La mercure-réductase du surnageant se lie spécifiquement aux fragments d’anticorps immobilisés. La fraction A contient principalement des protéines non retenues ; la protéine recherchée reste sur la colonne.
Étape 2, lavage. Le lavage élimine les contaminants résiduels. La fraction B contient ces autres protéines ; l’enzyme est encore retenue.
Étape 3, élution. L’ajout d’un compétiteur rompt la rétention spécifique. La fraction C contient la mercure-réductase libérée, ainsi que les constituants de la solution d’élution. C’est cette fraction qui sert à l’étude de l’activité. « Purifiée » ne signifie pas que le liquide contient exclusivement la protéine et rien d’autre.
Questions 11 à 15 — Mesurer l’activité
Q11. À 340 nm, le NADPH absorbe alors que le NADP⁺ absorbe très peu. À 260 nm, les deux formes absorbent : ce signal distinguerait moins bien la conversion. La longueur d’onde choisie permet de suivre la disparition du NADPH.
Q12. Le NADPH est consommé pendant la réduction de Hg²⁺ en Hg⁰. Sa concentration diminue, et l’absorbance à 340 nm diminue avec elle selon la loi de Beer-Lambert, pour une cuve et des conditions constantes.
Q13. La portion initiale presque rectiligne dure environ 1,5 min. Ensuite la courbe se ralentit et n’est plus appropriée à une mesure de vitesse initiale par une pente constante.
Q14. On peut utiliser les lectures initiales c₁ ≈ 0,25 mmol·L⁻¹ à t₁ = 0 min et c₂ ≈ 0,14 mmol·L⁻¹ à t₂ = 1 min :
vᵢ = |(c₂ − c₁)/(t₂ − t₁)| = |(0,14 − 0,25)/(1 − 0)| ≈ 0,11 mmol·L⁻¹·min⁻¹.
L’équation aux unités est (mmol·L⁻¹)/min = mmol·L⁻¹·min⁻¹. Une autre paire de points dans la portion initiale donne une valeur voisine, autour de 0,11 à 0,12. On prend la valeur absolue car la pente du substrat est négative, tandis que la vitesse annoncée est positive.
Q15. Le plateau du document 7 donne vₘₐₓ ≈ 0,165 mmol·L⁻¹·min⁻¹. Cette valeur dépasse 0,134 pour l’enzyme extraite de C. metallidurans, soit environ 23 % de plus, selon la même procédure. La préparation recombinante est donc fonctionnelle et donne une vitesse maximale supérieure dans cet essai. Sans normalisation par la quantité d’enzyme, on ne peut pas en déduire à elle seule une supériorité intrinsèque de chaque molécule enzymatique.
Question 16 — Diagramme opérationnel
Le diagramme ci-dessus peut se lire ainsi : amplifier merA avec sites EcoRI → digérer insert et vecteur → ligaturer → transformer E. coli → sélectionner sur kanamycine → vérifier merA par PCR → cultiver une souche exprimant l’enzyme → lyser et centrifuger → purifier par affinité → mesurer l’activité à 340 nm. La PCR sélectionne des colonies candidates ; l’activité finale établit que la chaîne a produit une enzyme fonctionnelle.
Partie II — Question 17 : la métaremédiation
La bioremédiation utilise des organismes vivants ou leurs activités pour réduire une pollution, la transformer ou la retirer d’un milieu. Dans le cas des métaux, il faut distinguer transformation chimique, extraction et destruction : changer l’état d’oxydation du mercure ne détruit pas l’élément. Une dépollution exige donc aussi de maîtriser le devenir du métal déplacé ou transformé.
Le document 8 montre l’intérêt d’associer plusieurs organismes. Des plantes métallo-résistantes absorbent les métaux et les accumulent. Des champignons mycorhiziens apportent eau et nutriments, ce qui aide les plantes à vivre dans un sol défavorable. Les communautés bactériennes de la rhizosphère participent, selon leurs capacités, aux transformations des polluants. L’association peut ainsi être plus efficace qu’un organisme isolé, à condition d’être adaptée au site.
L’expérience californienne citée approche 50 % d’élimination de certains métaux en six mois : elle donne un exemple de résultat, pas un rendement universel. L’éco-catalyse décrite valorise les métaux accumulés dans les feuilles pour fabriquer des catalyseurs. Cette récupération peut relier dépollution et économie circulaire.
Une approche combinée doit néanmoins éviter de déplacer le risque vers les herbivores et la chaîne alimentaire. Il faut récupérer et traiter les végétaux chargés, suivre les concentrations dans les différents compartiments et vérifier les conséquences de l’association choisie. La métaremédiation est donc intéressante parce qu’elle considère plantes, champignons et bactéries comme un ensemble fonctionnel ; son efficacité et sa sûreté restent à établir dans le milieu concerné.